

Il movimento volontario rappresenta una delle espressioni più complesse dell’organizzazione funzionale del sistema nervoso. Lungi dall’essere una semplice risposta muscolare a uno stimolo, ogni azione intenzionale emerge dall’integrazione dinamica di processi cognitivi, sensoriali e motori che si sviluppano lungo una gerarchia corticale e sottocorticale finemente coordinata.
All’interno di questo sistema, la corteccia motoria occupa una posizione centrale. Essa si è progressivamente rivelata una struttura altamente sofisticata, capace di rappresentare parametri fondamentali dell’azione quali la forza, la direzione, la sequenza temporale e il contesto funzionale del gesto. Le evidenze neurofisiologiche hanno mostrato come l’attività dei neuroni motori corticali non riflette semplicemente la contrazione muscolare, ma contribuisca attivamente alla codifica astratta del movimento.
Parallelamente, le aree premotorie e l’area motoria supplementare svolgono un ruolo cruciale nella trasformazione dell’intenzione in programmi motori strutturati, consentendo l’organizzazione di sequenze complesse e l’adattamento dell’azione alle richieste ambientali o agli scopi interni del soggetto. In questo quadro, il sistema motorio emerge come una rete distribuita, in cui pianificazione ed esecuzione non costituiscono fasi rigidamente separate, ma aspetti interdipendenti di un unico processo funzionale.
Questo articolo si propone di analizzare i principali meccanismi di codifica del movimento all’interno della corteccia motoria, integrando prospettive anatomiche, fisiologiche e funzionali. Attraverso l’esame dei modelli sperimentali classici e delle scoperte più rilevanti della neurofisiologia moderna, verrà delineato il passaggio dall’intenzione all’azione, mostrando come il sistema motorio costruisca, rappresenti e interpreti il movimento volontario.
Parliamo di:

Localizzazione, Anatomia e Citoarchitettura della Corteccia Motoria Primaria (M1)
Localizzazione Anatomica e Primi Passi Storici
La corteccia motoria primaria (M1), classicamente identificata come l’Area 4 di Brodmann, è situata nel lobo frontale, precisamente nel giro precentrale (Betz, 1874; Campbell, 1905; Brodmann, 1909), immediatamente anteriore al solco centrale (scissura di Rolando). Nell’essere umano, la maggior parte di quest’area è in realtà “nascosta” alla vista macroscopica superficiale, poiché si estende in profondità lungo la parete posteriore del solco centrale, riemergendo solo parzialmente sulla sua cresta (White, L. 1997; Yousry e collaboratori (1997). La funzione fondamentale di M1 risiede nel controllo dei movimenti volontari fini (Lawrence and Kuypers, 1968; Muir and Lemon, 1983) .
Dal punto di vista storico, nel 1874 il neuroanatomista ucraino Vladimir Betz rivoluzionò la neuroanatomia descrivendo per la prima volta dei “nidi cumulativi” di cellule piramidali giganti (Riesenpyramiden) proprio in questa regione. Betz fu un vero pioniere: perfezionò i metodi di fissazione e colorazione dei tessuti, aprendo ufficialmente l’era della citoarchitettonica corticale. Egli dimostrò che la corteccia non è una massa uniforme, ma presenta differenze citoarchitettoniche strettamente collegate alla funzione motoria, offrendo una base cellulare microscopica alle mappe macroscopiche scoperte poco prima dai fisiologi Fritsch e Hitzig (Nolan et al., 2024).

Corteccia Motoria Primaria (Area 4 di Brodmann). Situata nel giro precentrale del lobo frontale, esegue i movimenti volontari. Come dimostrato storicamente da Penfield e Boldrey nel 1937 tramite stimolazione elettrica intraoperatoria, la mappa di quest’area rispecchia in modo somatotopico le diverse parti del corpo, la cui eccitazione evoca risposte motorie mirate.
Essa è caratterizzata da un’organizzazione somatotopica dei distretti corporei, tradizionalmente rappresentata dall’“homunculus motorio”. L’estensione corticale dedicata a ciascun segmento non riflette la massa muscolare, bensì il grado di finezza e precisione del controllo motorio richiesto.
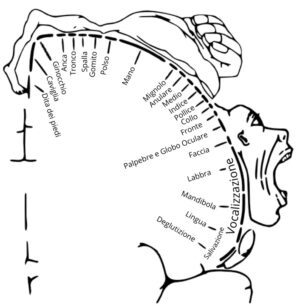
L’Homunculus Motorio. Questa rappresentazione visualizza la mappa somatotopica del corpo umano all’interno della corteccia motoria primaria. Come evidenziato nel contesto del sistema motorio, la superficie corticale dedicata al controllo di ciascuna parte del corpo non è proporzionale alle dimensioni fisiche, ma riflette piuttosto la finezza e la complessità dei movimenti. Si noti l’ampia rappresentazione di aree come le mani, le dita e le labbra, cruciali per movimenti precisi.
Dal punto di vista funzionale, M1 rappresenta la principale via di uscita corticale per l’esecuzione del movimento volontario, proiettando direttamente e indirettamente ai motoneuroni spinali attraverso il tratto corticospinale. Questa posizione gerarchica la rende un nodo cruciale nella trasformazione dei programmi motori in comandi effettori diretti alla muscolatura scheletrica.

(A) Il sistema laterale del controllo motorio volontario, che include il tratto corticospinale laterale e il tratto rubrospinale. Le fibre originano principalmente dalla corteccia motoria primaria (area 4), dall’area premotoria (area 6) e dalla ccorteccia somatosensoriale (aree 3, 1, 2). Dopo aver attraversato la capsula interna, queste fibre discendono nel tronco encefalico, attraversano il nucleo rosso e decussano nel bulbo all’altezza delle piramidi, per poi terminare nei motoneuroni spinali laterali che controllano i muscoli distali degli arti, fondamentali per i movimenti fini. (B) Il sistema mediale, comprendente il tratto corticospinale ventrale e le vie reticolo- e vestibolo-spinali, deputato al controllo dei muscoli assiali e della postura. Le fibre che non decussano nel bulbo proseguono nella colonna ventrale del midollo spinale, proiettandosi bilateralmente verso i motoneuroni che controllano i muscoli del tronco e del cingolo scapolare.
Oggi, grazie al consorzio internazionale BICCN (BRAIN Initiative Cell Census Network), siamo andati ben oltre la citoarchitettura classica, stilando un vero e proprio “censimento della popolazione” basato sul profilo genetico ed epigenetico di singole cellule. Esaminiamo M1 suddividendola nelle sue tre grandi macro-classi cellulari.
Il Paradosso dello Strato IV: La Corteccia Agranulare
Dal punto di vista della stratificazione neocorticale classica, lo strato IV (granulare interno) non è ben sviluppato nella corteccia motoria primaria, motivo per cui l’area 4 di Brodmann è storicamente considerata il prototipo della corteccia “agranulare”. Tuttavia, stabilire con assoluta certezza se la corteccia motoria primaria umana sia totalmente priva di neuroni dello strato IV rimane ancora oggi oggetto di forti controversie ( Bakken et al., 2021; García-Cabezas & Barbas, 2014; Nolan et al., 2024). Questo dibattito rappresenta un perfetto esempio delle sfide metodologiche che i neuroscienziati affrontano nel tentativo di delineare una tassonomia neuronale “definitiva” che sia risolta sia dal punto di vista spaziale che temporale; le identità morfologiche (ciò che vediamo al microscopio) e le identità trascrittomiche (il profilo genetico), infatti, possono non sovrapporsi perfettamente, né rimanere statiche nel corso della vita (Bakken et al., 2021; Nolan et al., 2024).
Da una prospettiva storica, persino i padri fondatori della neuroanatomia si scontrarono su questo punto: Santiago Ramón y Cajal descrisse e riconobbe l’esistenza di uno strato IV rudimentale nella corteccia motoria primaria umana; al contrario, Korbinian Brodmann ne contestò fermamente il riscontro nell’adulto, sostenendo che lo strato granulare IV fosse presente solo transitoriamente durante lo sviluppo fetale per poi scomparire del tutto nell’area 4 matura (García-Cabezas & Barbas, 2014).
Oggi, le moderne tecnologie genomiche stanno gettando nuova luce su questo antico dibattito. Recenti analisi trascrittomiche di singoli nuclei che hanno confrontato i diversi strati della corteccia motoria primaria umana (M1) con i set di dati del giro medio temporale nell’ uomo (MTG, una regione neocorticale che possiede uno strato IV marcatamente definito), suggeriscono che i neuroni glutamatergici (eccitatori) tipici dello strato IV sono effettivamente presenti anche nell’area 4 umana (Bakken et al., 2021). Nello specifico, si tratta di cellule che corrispondono geneticamente al tipo “ESR1” (caratteristico dello strato IV del giro medio temporale ), sebbene all’interno di M1 la loro presenza sia estremamente sparsa e rarefatta (Bakken et al., 2021). La corteccia motoria non è quindi rigorosamente priva di questa componente cellulare, presentando una citoarchitettura che la biologia molecolare moderna sta ridefinendo rispetto ai rigidi confini stabiliti all’inizio del Novecento.
La Localizzazione Macroanatomica della Corteccia Motoria: Il “Hand Knob” come Landmark Fondamentale
Nel mappare individualmente la corteccia motoria primaria di un paziente, fare affidamento esclusivo sulle coordinate stereotassiche generalizzate o sulle mappe citoarchitettoniche standardizzate di Brodmann può indurre in errore a causa della notevole variabilità morfologica interindividuale e interemisferica. Per ovviare a questo problema e garantire la massima precisione nella pratica neuroradiologica e neurochirurgica, l’identificazione diretta dell’area motoria si basa su specifici punti di riferimento macroanatomici (landmark) altamente stabili sulla superficie corticale.
Tra questi, il punto di riferimento più celebre, robusto e clinicamente validato per localizzare la rappresentazione somatotopica dell’arto superiore è il cosiddetto “Hand Knob” (noto anche in clinica come il “segno dell’omega invertito”). Descritto sistematicamente nello studio di Yousry e collaboratori (1997) attraverso l’uso della risonanza magnetica funzionale (fMRI), questo “pomello” anatomico corrisponde con precisione alla sede in cui risiedono i circuiti neurali deputati al controllo motorio della mano.
La caratterizzazione geometrica e tridimensionale dell’Hand Knob ne rivela la peculiare conformazione nello spazio e i precisi rapporti con la topografia dei solchi:
- Morfologia nei piani di scansione: Sul piano assiale, questo segmento del giro precentrale si presenta come una struttura sporgente a base ampia che assume la forma tipica di una lettera greca omega rovesciata o, in alcune varianti anatomiche umane, di un epsilon ), proiettandosi e protudendo in direzione posterolaterale direttamente all’interno del solco centrale. Sul piano sagittale, invece, la medesima struttura assume il profilo inequivocabile di un uncino (hook-like shape).
- Corrispondenza neuroanatomica classica: Sulla superficie cerebrale esterna (osservabile sia in vivo che sui preparati autoptici macroscopici), questo pomello precentrale corrisponde esattamente al cosiddetto “ginocchio medio” (middle knee) del solco centrale, una curvatura descritta sin dal diciannovesimo secolo dai neuroanatomisti classici (come Testut nel 1911) come una convessità posteriore . Esso si colloca solitamente in corrispondenza dell’intersezione tra il solco frontale superiore e il solco precentrale.
- Rapporti di confine: Dal punto di vista dei confini funzionali, la transizione posteriore tra la corteccia motoria primaria (Area 4) e la corteccia somatosensoriale primaria si situa generalmente in corrispondenza del fondo (fundus) del solco centrale, subito dietro la parete posteriore dell’Hand Knob.
- Validazione funzionale e invarianza clinica: Durante l’esecuzione di compiti motori semplici della mano (come il movimento ripetitivo di apertura/chiusura del pugno o la spremitura di una spugna), i segnali di attivazione emodinamica registrati tramite fMRI si localizzano costantemente sulla faccia posteriore di questa area precentrale. La straordinaria utilità clinica dell’Hand Knob risiede nella sua stabilità: Yousry et al. (1997) hanno dimostrato che questo landmark rimane chiaramente identificabile e affidabile non solo nei soggetti sani, ma anche in condizioni patologiche complesse (come in presenza di tumori infiltranti, edemi perilesionali o malformazioni arterovenose) che distorcono la normale anatomia emisferica, consentendo ai clinici di localizzare in sicurezza la corteccia elocuente della mano senza la necessità di mappare l’intero emisfero.

I Neuroni Eccitatori: I Neuroni Piramidali e le Cellule Giganti di Betz
I neuroni glutamatergici (eccitatori) utilizzano il glutammato come neurotrasmettitore e presentano una tipica forma a piramide, con un lungo dendrite apicale rivolto verso la superficie della corteccia. La moderna trascrittomica (Bakken et al., 2021) li divide principalmente in base alle loro destinazioni di proiezione assonale:
- Neuroni a Proiezione Intratelencefalica (IT – Intratelencephalic): Questi neuroni sono distribuiti in vari strati della corteccia (principalmente negli strati II, III, V e VI). Proiettano i loro assoni verso altre aree della corteccia cerebrale dello stesso emisfero, all’emisfero opposto (attraverso il corpo calloso) o verso il corpo striato, coordinando e integrando l’elaborazione motoria locale.
- Neuroni a Proiezione Estratelencefalica (ET o PT – Extratelencephalic / Pyramidal Tract): Situati nello strato V, questi neuroni inviano i loro assoni al di fuori del telencefalo, verso il tronco encefalico e il midollo spinale, costituendo la via d’uscita principale del comando motorio.
- Le Cellule di Betz: Rappresentano la sottoclasse più celebre ed estrema dei neuroni ET, localizzate nello strato Vb. Sono veri e propri “giganti” della neuroanatomia. Nonostante l’area motoria contribuisca a circa il 30% delle fibre del fascio corticospinale, le cellule di Betz costituiscono in realtà solo il 10% dei neuroni piramidali del quinto strato e il 2-3% delle cellule del tratto piramidale totale. Sono morfologicamente caratterizzate da un cospicuo accumulo di lipofuscina (un pigmento intracellulare) e da una complessa e fitta ramificazione dendritica basale.
- Analogia pratica: Pensa alle cellule di Betz come alle linee ferroviarie ad alta velocità (TAV). Negli umani e nei primati superiori, esse fanno sinapsi monosinaptica diretta con i motoneuroni del midollo spinale, permettendo una conduzione elettrica ultra-rapida per il controllo dei movimenti finissimi delle dita. Nei roditori (in cui la destrezza manuale è limitata rispetto a quella dell’uomo) , invece, questa connessione diretta non esiste e il segnale passa obbligatoriamente attraverso interneuroni intermedi del midollo spinale.
I Neuroni Inibitori: Gli Interneuroni GABAergici
Se i neuroni piramidali spingono sull’acceleratore, gli interneuroni GABAergici premono sul freno. Utilizzano il neurotrasmettitore acido gamma-amminobutirrico (GABA) per modulare, scolpire e rifinire l’attività eccitatoria, evitando che il segnale motorio diventi caotico o ridondante.
Gli studi multimodali del BICCN hanno evidenziato l’esistenza di circa 24 tipi di cellule GABAergiche principali, ampiamente conservate a livello evolutivo tra topo, uistitì (marmoset) e uomo, raggruppate in sei grandi sottoclassi trascrizionali (tra cui Lamp5, Sncg, Vip, Sst, Pvalb). Un esempio straordinario è rappresentato dalle Cellule Chandelier (ChC – a Candelabro): Questo tipo di interneurone (appartenente alla famiglia dei neuroni positivi alla parvalbumina) prende il nome dalla sua spettacolare forma microscopica che ricorda i bracci e le candele di un lampadario antico.. I loro terminali assonali formano delle “cartucce” sinaptiche che avvolgono specificamente il segmento iniziale dell’assone dei neuroni piramidali. Poiché il segmento iniziale è il punto esatto in cui nasce il potenziale d’azione, le cellule Chandelier agiscono come veri e propri “interruttori generali” in grado di inibre l’output eccitatorio di M1. È interessante notare una specializzazione legata alla specie: mentre nei topi queste cellule sono relegate quasi esclusivamente agli strati superficiali (strato II/III), nell’essere umano si sono espanse e sono distribuite in tutti gli strati corticali, riflettendo una complessità di controllo e modulazione decisamente superiore.
La Componente Non-Neurale: L’Infrastruttura di Supporto
Le cellule non-neurali (gliali e vascolari), accuratamente mappate in M1 attraverso l’analisi epigenomica e trascrittomica, mostrano un’identità molecolare altamente conservata tra i mammiferi. Esse costituiscono l’infrastruttura logistica ed energetica senza la quale i neuroni non potrebbero funzionare:
- Astrociti: Immaginali come i “tecnici di palco” e i nutrizionisti dei neuroni. Regolano finemente l’ambiente chimico circostante, riassorbono il neurotrasmettitore in eccesso e gestiscono l’apporto di glucosio ai neuroni piramidali, supportando l’altissimo dispendio energetico richiesto durante i compiti motori.
- Oligodendrociti e Cellule Progenitrici degli Oligodendrociti (OPC): Sono i costruttori della guaina mielinica. Rivestono gli assoni dei neuroni di proiezione (comprese le cellule di Betz), fungendo da isolante elettrico. Questa guaina è fondamentale per garantire che il comando motorio viaggi a velocità elevatissime (fino a oltre 100 m/s) dalla corteccia fino al midollo spinale.
- Microglia: Il sistema immunitario e di pulizia residente nel tessuto nervoso. Monitorano costantemente la salute delle sinapsi, potando quelle ridondanti o non funzionanti e proteggendo il tessuto da insulti patogeni o infiammatori.
- Cellule Vascolari (Endoteliali e Periciti): Formano le pareti dei capillari sanguigni e costituiscono la barriera emato-encefalica, regolando in modo selettivo il passaggio di nutrienti e ossigeno.
La Codifica del Movimento nella Corteccia Motoria Primaria (M1)
Codifica della forza e parametri dinamici
A partire dagli anni Sessanta del Novecento, gli studi elettrofisiologici condotti su primati non umani (Macaca mulatta) hanno permesso di indagare in modo sistematico l’attività dei singoli neuroni di M1. L’introduzione della registrazione extracellulare da singole unità in animali svegli e addestrati ha rappresentato una svolta metodologica, consentendo di correlare l’attività neuronale a parametri specifici del comportamento motorio.

Dinamica temporale della scarica dei PTN (Evarts, 1968). Il grafico illustra il ritardo temporale tra l’attivazione dei neuroni del tratto piramidale (linea continua) e l’effettiva insorgenza della forza muscolare misurata tramite elettromiografia (linea tratteggiata). La “scarica anticipatoria” dimostra che l’attività in M1 precede il movimento, agendo come un segnale predittivo della forza necessaria per vincere la resistenza. Nota: Rappresentazione a scopo didattico.
In questo contesto si collocano i lavori di Edward V. Evarts, che dimostrarono come la scarica neuronale in M1 non fosse semplicemente correlata al movimento in sé, ma modulata in funzione di parametri cinematici e dinamici dell’azione (Evarts, 1968).
Un risultato fondamentale emerso dagli studi di Evarts è che i neuroni corticospinali (pyramidal tract neurons, PTNs) manifestano una scarica anticipatoria rispetto all’insorgenza dell’attività elettromiografica (EMG). Tale anticipazione temporale conferma il ruolo di M1 non solo nell’esecuzione, ma anche nell’iniziazione del comando motorio.
La frequenza di scarica dei PTNs risulta proporzionale alla forza necessaria per produrre il movimento. In condizioni di carico crescente, i neuroni associati ai muscoli flessori aumentano la propria attività in modo sistematico, riflettendo l’incremento della resistenza esterna che si oppone al movimento. È particolarmente significativo che questa modulazione persista anche quando l’ampiezza del movimento articolare rimane costante, indicando che il segnale corticale codifica primariamente la richiesta di forza piuttosto che la traiettoria spaziale dell’arto (Evarts, 1968).

Modulazione della scarica neuronale in M1 in funzione del carico. Rappresentazione concettuale dell’attività dei neuroni del tratto piramidale (PTNs) durante un compito di flessione del polso. I grafici mostrano come la frequenza di scarica dei singoli neuroni non sia costante per lo stesso movimento, ma aumenti in modo proporzionale alla forza esercitata per contrastare carichi crescenti (Basso, Medio, Alto). Questo evidenzia come l’attività in M1 codifichi parametri dinamici dell’azione (forza) piuttosto che il semplice spostamento spaziale dell’arto. Nota: L’immagine è una ricostruzione a scopo illustrativo basata sui dati sperimentali di Evarts (1968) e non costituisce una figura originale dello studio.
Nel complesso, i dati suggeriscono che M1 operi come un regolatore della tensione muscolare, inviando comandi quantitativi relativi alla potenza necessaria per l’esecuzione dell’azione. Sebbene la maggioranza dei neuroni registrati rifletta parametri dinamici legati allo sforzo, una minoranza appare invece selettivamente sensibile alla direzione del movimento, indicando l’esistenza di una codifica multiparametrica all’interno della stessa area corticale.
Codifica direzionale e vettore di popolazione
Oltre ai parametri dinamici, la corteccia motoria primaria partecipa alla codifica cinematica del movimento, in particolare della sua direzione nello spazio tridimensionale. Le ricerche di Apostolos Georgopoulos hanno evidenziato che molti neuroni di M1 presentano una direzione preferenziale di scarica, descrivibile mediante una curva di tuning direzionale: l’attività neuronale è massima quando il movimento avviene lungo una specifica direzione e diminuisce gradualmente all’aumentare della deviazione angolare da tale asse (Georgopoulos et al., 1982).

Tuning direzionale dei neuroni in M1 (Modello di Georgopoulos). Rappresentazione del profilo di attivazione di un singolo neurone della corteccia motoria primaria in relazione alla direzione del movimento nello spazio. Il diagramma mostra come la frequenza di scarica (linee rosse) vari in modo sinusoidale al variare dell’angolo di movimento: l’attività è massima in corrispondenza della “Direzione Preferenziale” (qui centrata a 90°) e minima nella direzione opposta (270°). Questa distribuzione dimostra che i neuroni motori codificano parametri cinematici, ovvero la traiettoria del movimento. Nota: L’immagine è una rappresentazione concettuale basata sui lavori di Georgopoulos et al. (1982) e non costituisce una figura originale dello studio.
Poiché ogni singolo movimento è il risultato dell’attività coordinata di ampie popolazioni neuronali, la direzione effettiva dello spostamento non è determinata da un singolo neurone, ma emerge dalla combinazione delle attività individuali. Questo principio è formalizzato nel concetto di Vettore di Popolazione, in cui ciascun neurone contribuisce con un vettore orientato lungo la propria direzione preferenziale e pesato dalla frequenza di scarica. La somma vettoriale di tali contributi consente di predire con elevata accuratezza la direzione del movimento osservato (Georgopoulos et al., 1986).
Il Vettore di Popolazione e la codifica distribuita (Georgopoulos et al., 1986). La figura illustra come la direzione finale del movimento emerga dall’attività coordinata di una vasta popolazione di neuroni in M1. Ogni neurone contribuisce con un “vettore” basato sulla propria direzione preferenziale; la somma vettoriale di questi contributi individuali predice con estrema precisione la traiettoria del movimento. Questo modello suggerisce che il controllo motorio sia un processo distribuito e non localizzato in singole cellule specializzate

Integrazione sensori-motoria e campi recettivi
Un ulteriore aspetto cruciale dell’organizzazione di M1 riguarda la sua funzione integrativa. I neuroni della corteccia motoria primaria non agiscono come meri esecutori di comandi discendenti, ma ricevono costantemente informazioni afferenti relative alla posizione dei segmenti corporei, alla velocità del movimento e allo stato meccanico dei muscoli.
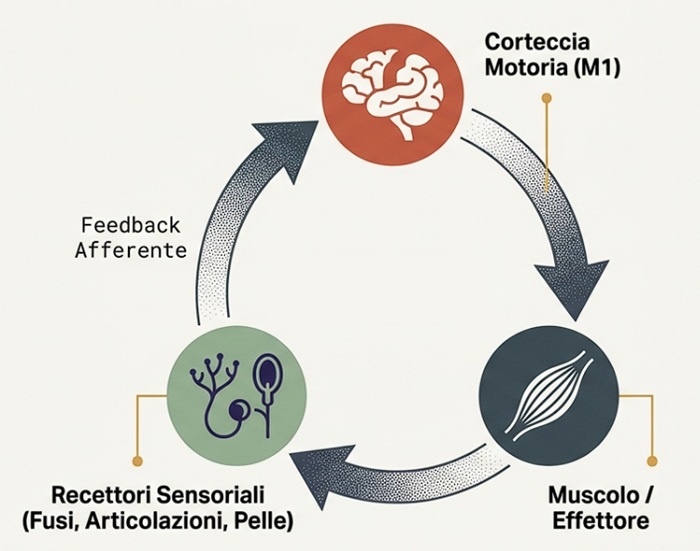
Integrazione Sensori-Motoria e Feedback in Tempo Reale. Rappresentazione del circuito funzionale che lega la corteccia motoria (M1) alla periferia sensoriale: M1 invia comandi ai muscoli (effettori) e riceve simultaneamente un feedback afferente dai recettori sensoriali (fusi neuromuscolari, articolazioni, pelle). Questo flusso continuo di informazioni consente a M1 di monitorare l’esecuzione motoria e applicare correzioni rapide e precise durante l’azione stessa, garantendo l’accuratezza del comportamento motorio.
Numerosi neuroni di M1 possiedono veri e propri campi recettivi periferici: alcune sottopopolazioni rispondono a stimoli tattili cutanei, altre al movimento articolare, mentre altre ancora sono sensibili allo stiramento dei fusi neuromuscolari. Questa convergenza di segnali somatosensoriali consente un monitoraggio continuo dell’arto in movimento e rende possibili correzioni rapide e precise dell’azione, anche attraverso archi riflessi transcorticali (Rosén & Asanuma, 1972).
Le Aree Premotorie e la Pianificazione del Movimento
Organizzazione e gerarchia funzionale
Le aree premotorie della corteccia cerebrale, comunemente indicate come corteccia motoria secondaria, sono localizzate nel lobo frontale in posizione rostrale rispetto alla corteccia motoria primaria (M1). Esse rivestono un ruolo cruciale nella pianificazione dei movimenti finalizzati a uno scopo, operando come un livello gerarchico superiore deputato alla trasformazione dell’intenzione motoria in programmi d’azione strutturati e contestualizzati.

Corteccia Motoria Secondaria. (Area di Brodmann 6) comprendente l’area premotoria (colorata di verde) e l’area motoria supplementare (colorata di viola). Queste regioni, localizzate anteriormente alla corteccia motoria primaria, svolgono un ruolo fondamentale nella pianificazione e nell’organizzazione dei movimenti complessi, nella coordinazione bilaterale e nella preparazione all’azione.
All’interno di questo sistema si distinguono due principali regioni funzionali: l’area motoria supplementare (supplementary motor area, SMA) e la corteccia premotoria (premotor cortex, PM). Entrambe presentano un’organizzazione somatotopica definita e proiettano in modo massiccio verso M1 (area 4). Inoltre, esse influenzano direttamente l’output motorio sia attraverso proiezioni corticospinali dirette ai motoneuroni del midollo spinale, sia indirettamente mediante connessioni con i nuclei motori del tronco dell’encefalo, contribuendo al controllo posturale, del tono muscolare e dei movimenti prossimali.
Dalla fisiologia alla clinica: le aprassie
La rilevanza funzionale delle aree premotorie emerge in modo particolarmente evidente dall’analisi degli effetti clinici delle lesioni corticali. Un danno circoscritto alla corteccia motoria primaria determina tipicamente deficit esecutivi quali paresi o paralisi, riflettendo la compromissione diretta dei comandi motori discendenti. Al contrario, lesioni che interessano le aree premotorie non compromettono in modo significativo la forza muscolare né la sensibilità, ma alterano profondamente la capacità di organizzare e pianificare azioni complesse.

Tali disturbi sono noti come aprassie. I pazienti aprassici sono in grado di eseguire movimenti semplici e isolati, ma falliscono nell’esecuzione di atti motori complessi che richiedono una precisa organizzazione temporale e spaziale delle contrazioni muscolari. Attività quotidiane apparentemente banali, come pettinarsi o lavarsi i denti, risultano pertanto compromesse non per un deficit esecutivo primario, bensì per l’incapacità di generare una strategia motoria coerente.
L’area motoria supplementare e i movimenti internally driven
L’area motoria supplementare svolge un ruolo specializzato nella pianificazione di sequenze motorie complesse e nel coordinamento bimanuale. A differenza della corteccia premotoria laterale, la SMA è particolarmente coinvolta nella generazione di movimenti volontari generati internamente (self-initiated o internally driven), ovvero azioni che non dipendono dalla presenza immediata di stimoli ambientali esterni.
Coerentemente con questa funzione, la stimolazione elettrica della SMA richiede treni di impulsi più intensi e prolungati rispetto a quelli necessari per evocare movimenti a partire da M1, suggerendo che i comandi motori generati in quest’area siano di natura più astratta e complessa.
Il legame tra SMA e processi mentali è stato elegantemente dimostrato dagli studi sul flusso ematico cerebrale regionale (rCBF). Roland e colleghi hanno osservato che l’esecuzione di sequenze complesse di movimenti delle dita attiva simultaneamente M1, la corteccia somatosensoriale e la SMA. Tuttavia, la semplice ripetizione mentale della medesima sequenza, in assenza di esecuzione motoria, determina un’attivazione selettiva della sola area motoria supplementare, indicando che l’attività neuronale di questa regione è strettamente associata alla pianificazione e all’ideazione dell’azione (Roland et al., 1980).

La corteccia premotoria e la guida sensoriale dell’azione
La corteccia premotoria laterale è specializzata nella pianificazione e nella preparazione di movimenti guidati da stimoli esterni, in particolare segnali visivi e uditivi. Essa svolge un ruolo fondamentale nell’apprendimento motorio associativo e nella selezione delle risposte motorie più appropriate in funzione del contesto ambientale.

La Corteccia Premotoria (PM) e il controllo guidato da stimoli esterni. La figura illustra il ruolo della corteccia premotoria laterale nella selezione dell’azione basata sul contesto ambientale. A differenza dell’Area Motoria Supplementare (SMA), la PM agisce come un “navigatore” che traduce segnali esterni (external cues) in programmi motori. L’esempio del semaforo mostra il processo di apprendimento associativo e selezione motoria: lo stimolo visivo viene elaborato e inviato alla PM, che attiva la risposta corretta (es. premere l’acceleratore), orientando il comportamento verso obiettivi spaziali specifici.
Le afferenze principali della PM provengono dalla corteccia parietale posteriore, consentendo l’integrazione di informazioni sensoriali spaziali necessarie per orientare il corpo e gli arti verso un obiettivo specifico. In questo ambito, l’identificazione dei neuroni definiti “set-related” ha fornito un contributo decisivo alla comprensione dei meccanismi di preparazione motoria: tali neuroni iniziano a scaricare in seguito alla presentazione di un segnale istruttivo, ma prima dell’inizio dell’azione, codificando la predisposizione all’atto motorio e la selezione della strategia comportamentale (Wise, 1985).

I neuroni specchio: il riflesso dell’azione
All’interno della corteccia premotoria ventrale del macaco (area F5), una delle scoperte più rilevanti della neurofisiologia contemporanea ha portato all’identificazione dei neuroni specchio. Descritti nei primi anni Novanta dal gruppo di Giacomo Rizzolatti presso l’Università di Parma, questi neuroni presentano una proprietà funzionale peculiare: si attivano sia durante l’esecuzione di un’azione finalizzata, sia durante l’osservazione della medesima azione compiuta da un altro individuo.
Il sistema dei neuroni specchio consente la trasformazione dell’informazione visiva in una rappresentazione motoria interna, permettendo al sistema nervoso di “simulare” l’atto osservato. Tale meccanismo va oltre la semplice percezione visiva e costituisce una forma di comprensione immediata dell’azione e dell’intenzione altrui. Basandosi sul proprio repertorio motorio, l’osservatore è in grado di decodificare il significato delle azioni osservate, fornendo una solida base neurobiologica per l’apprendimento per imitazione e per i processi empatici (Rizzolatti & Craighero, 2004).

Sintesi comparativa: M1, SMA e corteccia premotoria
La comprensione del controllo motorio richiede una visione integrata delle diverse aree corticali coinvolte, ciascuna caratterizzata da una specifica funzione all’interno di una gerarchia funzionale distribuita. In questo contesto, la corteccia motoria primaria (M1), l’area motoria supplementare (SMA) e la corteccia premotoria (PM) possono essere considerate come nodi distinti ma strettamente interconnessi di un unico sistema.
La corteccia motoria primaria rappresenta il livello più direttamente esecutivo del sistema motorio. La sua attività è fortemente correlata ai parametri dinamici e cinematici del movimento, quali forza, direzione e velocità, e si traduce in comandi discendenti che raggiungono direttamente i motoneuroni spinali. M1 opera dunque come l’interfaccia finale tra i programmi motori corticali e l’apparato muscolare periferico.
L’area motoria supplementare occupa invece un livello funzionale più astratto. Essa è principalmente coinvolta nella pianificazione di sequenze motorie complesse, nel coordinamento bimanuale e nella generazione di movimenti autodiretti, indipendenti da stimoli sensoriali immediati. L’attivazione selettiva della SMA durante la semplice rappresentazione mentale del movimento indica che questa regione codifica l’intenzione e la struttura temporale dell’azione, prima che essa venga tradotta in comandi esecutivi.
La corteccia premotoria laterale si colloca a un livello intermedio tra ideazione ed esecuzione. La sua funzione principale consiste nella selezione e preparazione dei movimenti in risposta a segnali esterni, integrando informazioni sensoriali provenienti in particolare dalla corteccia parietale posteriore. Attraverso l’attività dei neuroni set-related e dei circuiti visuo-motori, la PM traduce il contesto ambientale in schemi d’azione appropriati, fungendo da ponte tra percezione e movimento.

Nel loro insieme, M1, SMA e PM non operano come moduli isolati, ma come componenti dinamiche di una rete distribuita. L’azione volontaria emerge dall’interazione continua tra questi livelli: dall’intenzione astratta e dalla pianificazione sequenziale (SMA), alla selezione contestuale guidata dagli stimoli (PM), fino alla codifica precisa dei parametri muscolari necessari all’esecuzione (M1). Questa organizzazione gerarchica e parallela consente al sistema motorio umano di essere al contempo flessibile, adattivo e straordinariamente preciso.
Conclusione:
L’analisi dei meccanismi di codifica del movimento all’interno del sistema motorio evidenzia come l’azione volontaria non possa essere ridotta a una semplice catena di comandi discendenti diretti ai muscoli. Al contrario, essa emerge dall’attività coordinata di popolazioni neuronali distribuite lungo la corteccia motoria primaria, le aree premotorie e l’area motrice supplementare, ciascuna delle quali contribuisce in modo specifico alla rappresentazione dei parametri fondamentali del movimento. Tuttavia, queste regioni corticali non operano in modo isolato, ma sono inserite in una rete funzionale più ampia che comprende anche altre strutture encefaliche di primaria importanza, quali i nuclei della base e il cervelletto
Le evidenze sperimentali hanno dimostrato che la corteccia motoria primaria non codifica il movimento in termini puramente spaziali, ma integra informazioni dinamiche e cinematiche, quali forza, direzione e traiettoria dell’azione. Il concetto di vettore di popolazione ha fornito una chiave interpretativa cruciale per comprendere come la direzione del movimento emerga dalla combinazione dell’attività di numerosi neuroni, superando l’idea di una corrispondenza univoca tra singola cellula e singolo atto motorio. L’efficacia di tale codifica dipende inoltre dalla modulazione esercitata dai circuiti dei nuclei della base e del cervelletto, che contribuiscono rispettivamente alla selezione dei programmi motori e alla regolazione fine della loro esecuzione.
Parallelamente, il ruolo delle aree premotorie e dell’area motrice supplementare chiarisce come la pianificazione dell’azione preceda e strutturi l’esecuzione motoria. Le dissociazioni cliniche osservate nelle aprassie, così come le attivazioni selettive durante la pianificazione e l’immaginazione motoria, confermano che l’organizzazione temporale e funzionale del movimento è un processo corticalmente mediato, ma al tempo stesso strettamente dipendente dall’integrazione con sistemi sottocorticali coinvolti nell’apprendimento motorio, nel controllo della sequenzialità e nell’adattamento dell’azione al contesto.
Infine, la scoperta dei neuroni specchio ha ampliato la concezione tradizionale del sistema motorio, mostrando come le rappresentazioni motorie non siano esclusivamente finalizzate all’azione, ma partecipino anche alla comprensione dei comportamenti altrui. In questo senso, il sistema motorio si configura come un’interfaccia fondamentale tra percezione, cognizione e azione, all’interno di una rete distribuita che coinvolge strutture corticali e sottocorticali.
Nel complesso, la codifica del movimento appare come un processo distribuito, dinamico e intrinsecamente integrativo, in cui l’intenzione e l’azione costituiscono momenti diversi di un’unica architettura funzionale. Questa prospettiva non solo arricchisce la comprensione neurofisiologica del movimento volontario, ma offre anche un quadro teorico essenziale per l’interpretazione dei disturbi motori e per lo sviluppo di approcci clinici e riabilitativi fondati su una visione sistemica dell’azione.
Potrebbe interessarti:

Organizzazione del Sistema Motorio: Midollo Spinale, Tronco Encefalico e Corteccia
In questo articolo, approfondiremo l’organizzazione e il funzionamento del sistema motorio, analizzandolo attraverso tre livelli fondamentali: il midollo spinale, i sistemi a proiezione discendente del tronco dell’encefalo e le aree motorie della corteccia cerebrale

Sistema Motorio: Principi Fondamentali della Generazione e Controllo del Movimento
Quando ci muoviamo, mettiamo in atto una serie di processi complessi che coinvolgono il nostro sistema nervoso e i nostri muscoli. In questo articolo, esploreremo come il nostro cervello pianifica e controlla i movimenti.
Riferimenti Bibliografici:
- Bakken, T. E., Jorstad, N. L., Hu, Q., Lake, B. B., Tian, W., Kalmbach, B. E., Crow, M., Hodge, R. D., Krienen, F. M., Sorensen, S. A., Eggermont, J., Yao, Z., Aevermann, B. D., Aldridge, A. I., Bartlett, A., Bertagnolli, D., Casper, T., Castanon, R. G., Crichton, K., & Lein, E. S. (2021). Comparative cellular analysis of motor cortex in human, marmoset and mouse. Nature, 598(7879), 111–119. https://doi.org/10.1038/s41586-021-03465-8
- Betz, W. (1874). Anatomischer Nachweis zweier Gehirncentra. Centralblatt für die medicinischen Wissenschaften, 12, 578–580, 595–599.
- Brodmann, K. (1905). Beiträge zur histologischen Lokalisation der Grosshirnrinde. Dritte Mitteilung: Die Rindenfelder der niederen Affen. J Psychol Neurol Lpz, 4, 177–226.
- Brodmann, K. (1909). Vergleichende Lokalisationslehre der Grosshirnrinde in ihren Prinzipien dargestellt auf Grund des Zellenbaues. Johann Ambrosius Barth.
- Campbell, A. W. (1905). Histological studies on the localisation of cerebral function. Cambridge University Press.
- Evarts, E. V. (1968). Relation of pyramidal tract activity to force exerted during voluntary movement. Journal of Neurophysiology, 31(1), 14–27.
- García-Cabezas, M. Á., & Barbas, H. (2014). Area 4 has layer IV in adult primates. Eur J Neurosci, 39, 1824–1834. https://doi.org/10.1111/ejn.12585
- Georgopoulos, A. P., Kalaska, J. F., Caminiti, R., & Massey, J. T. (1982). On the relations between the direction of two-dimensional arm movements and cell discharge in primate motor cortex. Journal of Neuroscience, 2(11), 1527–1537.
- Georgopoulos, A. P., Schwartz, A. B., & Kettner, R. E. (1986). Neuronal population coding of movement direction. Science, 233(4771), 1416–1419.
- Lawrence, D. G., & Kuypers, H. G. (1968). The functional organization of the motor system in the monkey: I. The effects of bilateral pyramidal lesions. Brain, 91, 1–14.
- Muir, R. B., & Lemon, R. N. (1983). Corticospinal neurons with a special role in precision grip. Brain Res, 261, 312–316.
- Nolan, M., Scott, C., Hof, P. R., & Ansorge, O. (2024). Betz cells of the primary motor cortex. J Comp Neurol, 532(1), e25567. https://doi.org/10.1002/cne.25567
- Passingham, R. (1993). The Frontal Lobes and Voluntary Action. Oxford University Press.
- Penfield W, Boldrey E (1937). Somatic motor and sensory representation in the cerebral cortex of man as studied by electrical stimulation. Brain; 60: 389–440.
- Rizzolatti, G., & Craighero, L. (2004). The mirror-neuron system. Annual Review of Neuroscience, 27, 169–192.
- Roland, P. E., Larsen, B., Lassen, N. A., & Skinhøj, E. (1980). Supplementary motor area and other cortical areas in organization of voluntary movements in man. Journal of Neurophysiology, 43(1), 118–136.
- Rosén, I., & Asanuma, H. (1972). Peripheral afferent inputs to the forelimb area of the monkey motor cortex: Input-output relations. Experimental Brain Research, 14(3), 257–273.
- Testut L (1911). Traite d’anatomie humaine. Paris: Octave Doin et Fils.
- White, L. (1997). Structure of the human sensorimotor system. I: Morphology and cytoarchitecture of the central sulcus. Cerebral Cortex, 7(1), 18–30. https://doi.org/10.1093/cercor/7.1.18
- Wise, S. P. (1985). The primate premotor cortex: Past, present, and preparatory. Annual Review of Neuroscience, 8(1), 1–19.
- Yousry, T. (1997). Localization of the motor hand area to a knob on the precentral gyrus. A new landmark. Brain, 120(1), 141–157. https://doi.org/10.1093/brain/120.1.141


